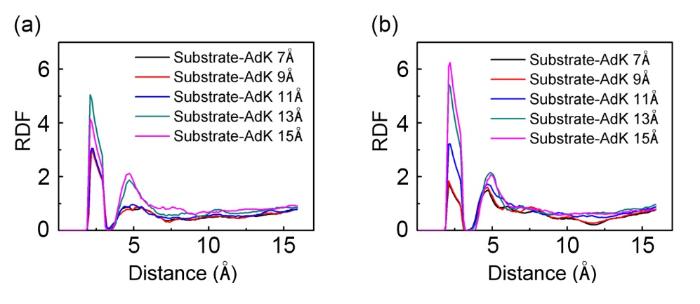
Adenylate kinase (AdK) is a multisubstrate enzyme catalyzing the reversible phosphoryl transfer reaction and maintaining the energy balance of the body. The rate⁃limiting step of the whole AdK catalytic cycle is the product ADP releasing which is coupled with conformational change and hydration process. Recent research reveals that the substrate ATP and product ADP cobound state tends to facilitate the rate⁃limiting product releasing. In this work,by using all⁃atom molecular dynamics simulations with hamiltonian replica exchange and umbrella sampling,we simulated the hydration process of the,phosphate groups of the products/substrates and the key residues in the binding sites during the disassociation of product ADP. The results show that the oxygen atoms of the phosphate groups coordinated with can be gradually replaced by water molecules during the releaing process of the product ADP,demonstrating a coordination exchange process. Meanwhile,the results show that the coordination exchange is more prominent in the substrate⁃product cobound state than that in the two⁃product bound state. In addition,the radial distribution function of water molecules around the reveals that more water molecules enter into the fist cooridnation shell in the substrate⁃product cobound state. We also analyzed the detailed hydration process of the product ADP and the key residues in the binding sites. As the hydration process can affect the product releasing,our work provides insight into the detailed molecular mechanism of the product release of the enzymatic cycle of AdK.
Kong Jianyang, Li Wenfei, Wang Wei. Hydration process in the product releasing of the enzymatic cycle of Adenylate Kinase. Journal of nanjing University[J], 2020, 56(2): 244-252 doi:10.13232/j.cnki.jnju.2020.02.010
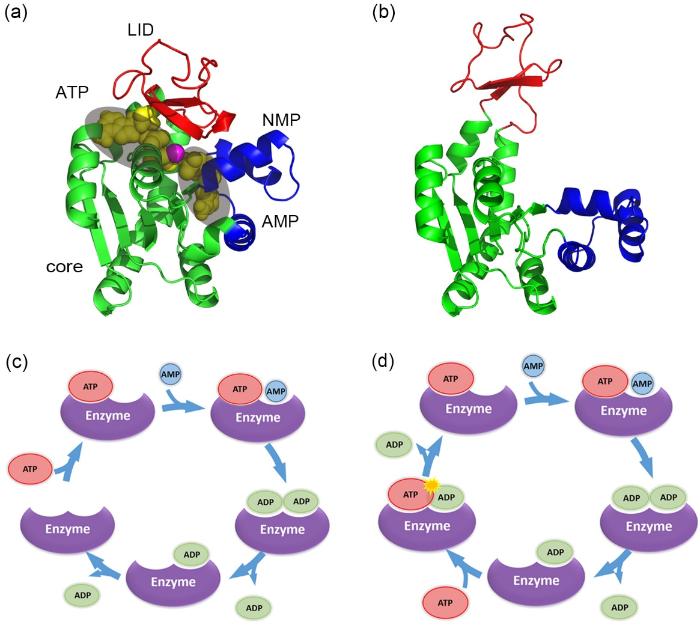
在以往的研究中,人们利用实验和分子模拟的方法,从结构和动力学上探讨了AdK的催化循环过程[9,10,11,12,13,14].例如,Wang et al[13]通过双势阱模型对AdK的构象变化自由能面及其动力学机制做了详细研究,并深入刻画了底物分子结合与蛋白质构象运动之间的耦合机制.Hanson et al[5]通过单分子FRET实验跟踪了酶分子在整个催化循环中的构象分布,发现即使在没有结合底物的情况下,AdK仍有很大概率处于构象“关闭”状态.Ye et al[14]基于常规分子模拟和加速采样方法对整个催化循环进行了模拟,提出了催化循环中底物结合和构象运动的可能耦合机制.特别是,Adkar et al[15]基于分子动力学模拟发现,AdK在催化循环中存在“半开半闭”的构象状态,并且这种状态的稳定性来源于水分子和极性氨基酸(精氨酸和组氨酸)之间的特异性相互作用.最近,人们也开始关注和水分子在催化循环中的作用.例如,Kerns et al[4]基于结构生物学方法深入探讨了在催化循环中的作用,发现不仅在磷酸根转移反应中起了关键作用,还有助于通过静电屏蔽效应促进催化产物释放.崔大超等[16]也报道了与催化产物ADP的配位情况.另外,关于催化循环路径的研究也取得了重要进展.例如,以往认为AdK的催化循环过程遵循图1c的流程,即产物完全释放后才有底物结合[4].最近的研究发现,在AdK的催化循环中,底物分子可以在限速产物释放之前结合形成底物⁃产物共存态[17].这种,底物⁃产物共存态会导致结合位点的空间阻挫效应,并能够促进产物释放(图1d).
分子动力学模拟使用腺苷酸激酶的构象闭合态作为初始结构(PDB code:1AKE)[18].底物和产物分子的坐标由构象闭态晶体结构(PDB:1AKE)中的配体分子Ap5A构建.由于晶体结构1AKE中没有的位置信息,在分子模拟中,的位置基于Berry and Phillips[20]给出的晶体结构(PDB code:1ZIO)重建.蛋白质AdK放置在一个边长为27的截角正八面体水盒子,共包含约8000个TIP3P水分子[21].分子动力学模拟采用了Amber14软件[22],蛋白质的力场选用了Amberff14SB力场[23],ATP和ADP的力场使用了Meagher et al[24]给出的参数;参数选自Allnér et al[25].另外,在模拟体系中加入了来维持系统的电中性[26]所有的模拟中,非键相互作用的截断距离被设置为9,并使用了PME方法来计算长程静电相互作用[27].所有与氢原子相连的共价键采用SHAKE算法进行约束[28],模拟的时间步长设置为2 fs.
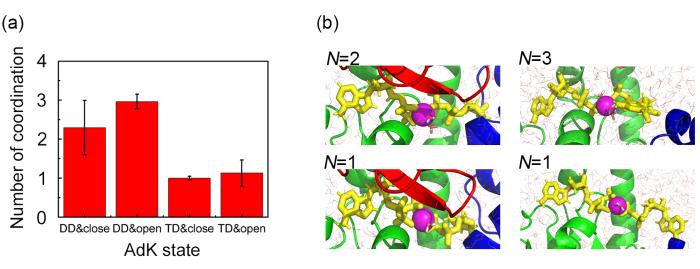
蛋白质内的水分子是蛋白质的重要结构组成部分,对蛋白质的功能和构象变化起到至关重要的作用.例如,Adkar et al[15]的研究发现水分子对AdK的半开半闭构象状态的稳定性起了关键作用.为了理解不同状态下水分子与之间的相互作用,本文模拟了DD,TD态下,AdK分别在构象闭态和构象开态中,水分子与的配位情况.在判断水分子是否与配位结合时,截断距离设置为2.6.所采用的截断距离能够包含典型的⁃O配位距离[33].如图2a所示,在DD态下,AdK在构象闭态和构象开态平均结合的水分子数目分别为2.2和2.8个.相应的代表性结构在图2b中给出.对比TD态与DD态配位水分子数目的变化可以看出,在TD态时,构象闭态和构象开态的只与一个水分子配位;而在DD态时,构象闭态和构象开态的可以分别与两个和三个水分子配位.进一步的分析发现,这种TD态和DD态的水合现象的差异来源于与磷酸根的不同结合模式.在DD态,分别与两个ADP的末端磷酸根结合.而在TD态,倾向于与ATP的两个磷酸根以及ADP的末端磷酸根结合;从而只可以在有限的空间方向上配位一个水分子.这种TD态的与ATP磷酸根的结合模式使得其水分子配位数即使在构象打开后也不会有显著变化,表现出与DD的水分子配位情况的显著差别.这种在TD态和DD态的不同位配位模式可能会进一步影响蛋白质的局部氢键网络结构,进而影响蛋白质的构象变化和产物释放过程.
Fig.2
(a) Average number of coordinating with Mg2+ in DD and TD states at the closed and open states (error bar indicates the standard error of the number of in the corresponding state), (b) representative structures showing the coordination between Mg2+ and in DD and TD states at the closed and open state (b) Mg2+配位结构示意图,左上、右上、左下、右下依次为DD态的构象闭态、DD态的构象开态、TD态的构象闭态以及TD态的构象开态,Mg2+由绛红色小球表示
Fig.3
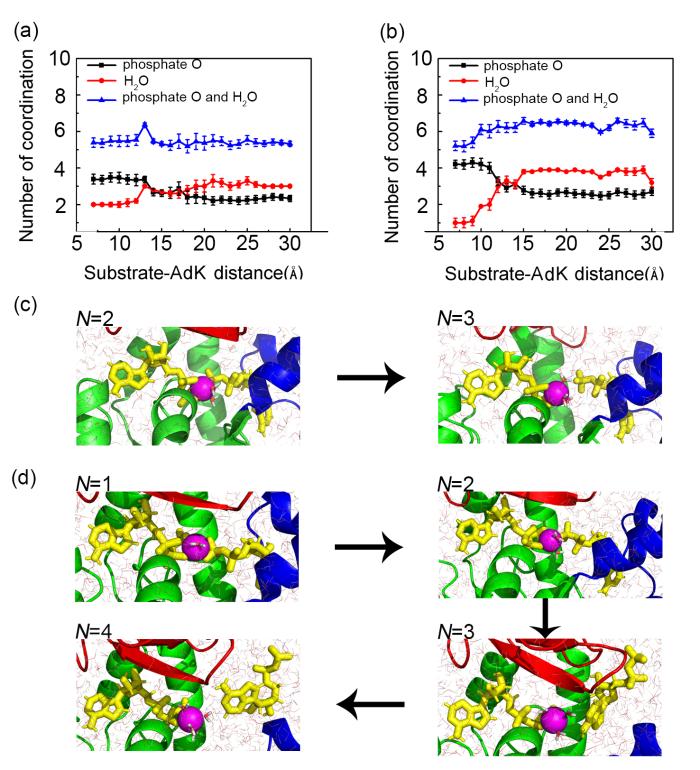
Number of coordination of Mg2+ during the disassociation of NMP product ADP in the chemical states of DD (a) and TD (b),representative structures showing the coordination of Mg2+ during the disassociation of NMP product ADP in the chemical states of DD (c) and TD (d)
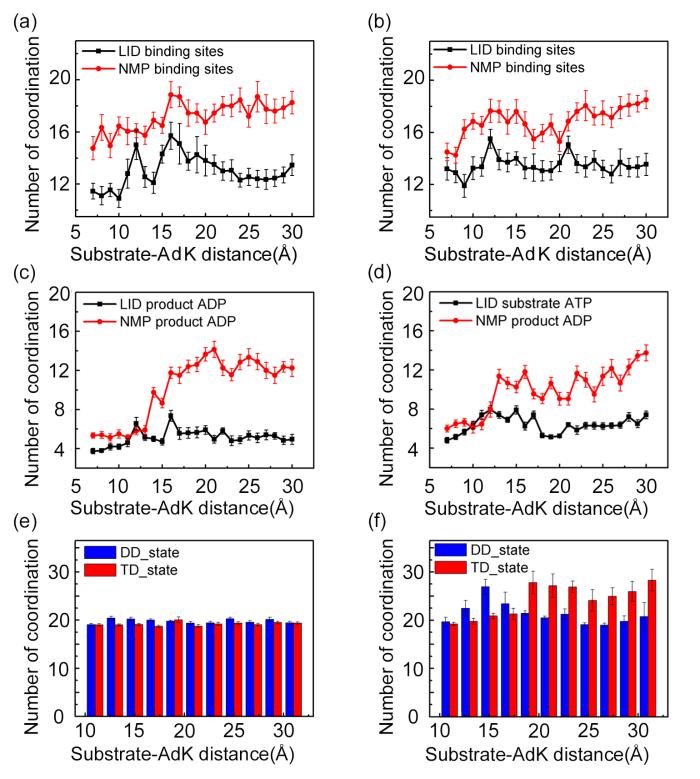
Fig.5
Number of coordinating with binding sites in the chemical state of DD (a) and TD (b) state, number of coordinating with substrate/product in the chemical state of DD (c) and TD (d) state,LID⁃core distance (e) and NMP⁃core distance(f)
The crystal structure of Mycobacterium tuberculosis adenylate kinase in complex with two molecules of ADP and Mg2+ supports an associative mechanism for phosphoryl transfer
Crystal structures ofBacillus stearothermophilus adenylate kinase with bound Ap5A,Mg2+ Ap5A,and Mn2+ Ap5A reveal an intermediate lid position and six coordinate octahedral geometry for bound Mg2+ and Mn2+
... 在以往的研究中,人们利用实验和分子模拟的方法,从结构和动力学上探讨了AdK的催化循环过程[9,10,11,12,13,14].例如,Wang et al[13]通过双势阱模型对AdK的构象变化自由能面及其动力学机制做了详细研究,并深入刻画了底物分子结合与蛋白质构象运动之间的耦合机制.Hanson et al[5]通过单分子FRET实验跟踪了酶分子在整个催化循环中的构象分布,发现即使在没有结合底物的情况下,AdK仍有很大概率处于构象“关闭”状态.Ye et al[14]基于常规分子模拟和加速采样方法对整个催化循环进行了模拟,提出了催化循环中底物结合和构象运动的可能耦合机制.特别是,Adkar et al[15]基于分子动力学模拟发现,AdK在催化循环中存在“半开半闭”的构象状态,并且这种状态的稳定性来源于水分子和极性氨基酸(精氨酸和组氨酸)之间的特异性相互作用.最近,人们也开始关注和水分子在催化循环中的作用.例如,Kerns et al[4]基于结构生物学方法深入探讨了在催化循环中的作用,发现不仅在磷酸根转移反应中起了关键作用,还有助于通过静电屏蔽效应促进催化产物释放.崔大超等[16]也报道了与催化产物ADP的配位情况.另外,关于催化循环路径的研究也取得了重要进展.例如,以往认为AdK的催化循环过程遵循图1c的流程,即产物完全释放后才有底物结合[4].最近的研究发现,在AdK的催化循环中,底物分子可以在限速产物释放之前结合形成底物⁃产物共存态[17].这种,底物⁃产物共存态会导致结合位点的空间阻挫效应,并能够促进产物释放(图1d). ...
... 在以往的研究中,人们利用实验和分子模拟的方法,从结构和动力学上探讨了AdK的催化循环过程[9,10,11,12,13,14].例如,Wang et al[13]通过双势阱模型对AdK的构象变化自由能面及其动力学机制做了详细研究,并深入刻画了底物分子结合与蛋白质构象运动之间的耦合机制.Hanson et al[5]通过单分子FRET实验跟踪了酶分子在整个催化循环中的构象分布,发现即使在没有结合底物的情况下,AdK仍有很大概率处于构象“关闭”状态.Ye et al[14]基于常规分子模拟和加速采样方法对整个催化循环进行了模拟,提出了催化循环中底物结合和构象运动的可能耦合机制.特别是,Adkar et al[15]基于分子动力学模拟发现,AdK在催化循环中存在“半开半闭”的构象状态,并且这种状态的稳定性来源于水分子和极性氨基酸(精氨酸和组氨酸)之间的特异性相互作用.最近,人们也开始关注和水分子在催化循环中的作用.例如,Kerns et al[4]基于结构生物学方法深入探讨了在催化循环中的作用,发现不仅在磷酸根转移反应中起了关键作用,还有助于通过静电屏蔽效应促进催化产物释放.崔大超等[16]也报道了与催化产物ADP的配位情况.另外,关于催化循环路径的研究也取得了重要进展.例如,以往认为AdK的催化循环过程遵循图1c的流程,即产物完全释放后才有底物结合[4].最近的研究发现,在AdK的催化循环中,底物分子可以在限速产物释放之前结合形成底物⁃产物共存态[17].这种,底物⁃产物共存态会导致结合位点的空间阻挫效应,并能够促进产物释放(图1d). ...
Dynamic allostery can drive cold adaptation in enzymes
... 在以往的研究中,人们利用实验和分子模拟的方法,从结构和动力学上探讨了AdK的催化循环过程[9,10,11,12,13,14].例如,Wang et al[13]通过双势阱模型对AdK的构象变化自由能面及其动力学机制做了详细研究,并深入刻画了底物分子结合与蛋白质构象运动之间的耦合机制.Hanson et al[5]通过单分子FRET实验跟踪了酶分子在整个催化循环中的构象分布,发现即使在没有结合底物的情况下,AdK仍有很大概率处于构象“关闭”状态.Ye et al[14]基于常规分子模拟和加速采样方法对整个催化循环进行了模拟,提出了催化循环中底物结合和构象运动的可能耦合机制.特别是,Adkar et al[15]基于分子动力学模拟发现,AdK在催化循环中存在“半开半闭”的构象状态,并且这种状态的稳定性来源于水分子和极性氨基酸(精氨酸和组氨酸)之间的特异性相互作用.最近,人们也开始关注和水分子在催化循环中的作用.例如,Kerns et al[4]基于结构生物学方法深入探讨了在催化循环中的作用,发现不仅在磷酸根转移反应中起了关键作用,还有助于通过静电屏蔽效应促进催化产物释放.崔大超等[16]也报道了与催化产物ADP的配位情况.另外,关于催化循环路径的研究也取得了重要进展.例如,以往认为AdK的催化循环过程遵循图1c的流程,即产物完全释放后才有底物结合[4].最近的研究发现,在AdK的催化循环中,底物分子可以在限速产物释放之前结合形成底物⁃产物共存态[17].这种,底物⁃产物共存态会导致结合位点的空间阻挫效应,并能够促进产物释放(图1d). ...
How enzymes work:A look through the perspective of molecular viscoelastic properties
1
2013
... 在以往的研究中,人们利用实验和分子模拟的方法,从结构和动力学上探讨了AdK的催化循环过程[9,10,11,12,13,14].例如,Wang et al[13]通过双势阱模型对AdK的构象变化自由能面及其动力学机制做了详细研究,并深入刻画了底物分子结合与蛋白质构象运动之间的耦合机制.Hanson et al[5]通过单分子FRET实验跟踪了酶分子在整个催化循环中的构象分布,发现即使在没有结合底物的情况下,AdK仍有很大概率处于构象“关闭”状态.Ye et al[14]基于常规分子模拟和加速采样方法对整个催化循环进行了模拟,提出了催化循环中底物结合和构象运动的可能耦合机制.特别是,Adkar et al[15]基于分子动力学模拟发现,AdK在催化循环中存在“半开半闭”的构象状态,并且这种状态的稳定性来源于水分子和极性氨基酸(精氨酸和组氨酸)之间的特异性相互作用.最近,人们也开始关注和水分子在催化循环中的作用.例如,Kerns et al[4]基于结构生物学方法深入探讨了在催化循环中的作用,发现不仅在磷酸根转移反应中起了关键作用,还有助于通过静电屏蔽效应促进催化产物释放.崔大超等[16]也报道了与催化产物ADP的配位情况.另外,关于催化循环路径的研究也取得了重要进展.例如,以往认为AdK的催化循环过程遵循图1c的流程,即产物完全释放后才有底物结合[4].最近的研究发现,在AdK的催化循环中,底物分子可以在限速产物释放之前结合形成底物⁃产物共存态[17].这种,底物⁃产物共存态会导致结合位点的空间阻挫效应,并能够促进产物释放(图1d). ...
Enzyme millisecond conformational dynamics do not catalyze the chemical step
1
2009
... 在以往的研究中,人们利用实验和分子模拟的方法,从结构和动力学上探讨了AdK的催化循环过程[9,10,11,12,13,14].例如,Wang et al[13]通过双势阱模型对AdK的构象变化自由能面及其动力学机制做了详细研究,并深入刻画了底物分子结合与蛋白质构象运动之间的耦合机制.Hanson et al[5]通过单分子FRET实验跟踪了酶分子在整个催化循环中的构象分布,发现即使在没有结合底物的情况下,AdK仍有很大概率处于构象“关闭”状态.Ye et al[14]基于常规分子模拟和加速采样方法对整个催化循环进行了模拟,提出了催化循环中底物结合和构象运动的可能耦合机制.特别是,Adkar et al[15]基于分子动力学模拟发现,AdK在催化循环中存在“半开半闭”的构象状态,并且这种状态的稳定性来源于水分子和极性氨基酸(精氨酸和组氨酸)之间的特异性相互作用.最近,人们也开始关注和水分子在催化循环中的作用.例如,Kerns et al[4]基于结构生物学方法深入探讨了在催化循环中的作用,发现不仅在磷酸根转移反应中起了关键作用,还有助于通过静电屏蔽效应促进催化产物释放.崔大超等[16]也报道了与催化产物ADP的配位情况.另外,关于催化循环路径的研究也取得了重要进展.例如,以往认为AdK的催化循环过程遵循图1c的流程,即产物完全释放后才有底物结合[4].最近的研究发现,在AdK的催化循环中,底物分子可以在限速产物释放之前结合形成底物⁃产物共存态[17].这种,底物⁃产物共存态会导致结合位点的空间阻挫效应,并能够促进产物释放(图1d). ...
Energy landscape topography reveals the underlying link between binding specificity and activity of enzymes
1
2016
... 在以往的研究中,人们利用实验和分子模拟的方法,从结构和动力学上探讨了AdK的催化循环过程[9,10,11,12,13,14].例如,Wang et al[13]通过双势阱模型对AdK的构象变化自由能面及其动力学机制做了详细研究,并深入刻画了底物分子结合与蛋白质构象运动之间的耦合机制.Hanson et al[5]通过单分子FRET实验跟踪了酶分子在整个催化循环中的构象分布,发现即使在没有结合底物的情况下,AdK仍有很大概率处于构象“关闭”状态.Ye et al[14]基于常规分子模拟和加速采样方法对整个催化循环进行了模拟,提出了催化循环中底物结合和构象运动的可能耦合机制.特别是,Adkar et al[15]基于分子动力学模拟发现,AdK在催化循环中存在“半开半闭”的构象状态,并且这种状态的稳定性来源于水分子和极性氨基酸(精氨酸和组氨酸)之间的特异性相互作用.最近,人们也开始关注和水分子在催化循环中的作用.例如,Kerns et al[4]基于结构生物学方法深入探讨了在催化循环中的作用,发现不仅在磷酸根转移反应中起了关键作用,还有助于通过静电屏蔽效应促进催化产物释放.崔大超等[16]也报道了与催化产物ADP的配位情况.另外,关于催化循环路径的研究也取得了重要进展.例如,以往认为AdK的催化循环过程遵循图1c的流程,即产物完全释放后才有底物结合[4].最近的研究发现,在AdK的催化循环中,底物分子可以在限速产物释放之前结合形成底物⁃产物共存态[17].这种,底物⁃产物共存态会导致结合位点的空间阻挫效应,并能够促进产物释放(图1d). ...
Exploring the dynamic functional landscape of Adenylate Kinase modulated by substrates
2
2013
... 在以往的研究中,人们利用实验和分子模拟的方法,从结构和动力学上探讨了AdK的催化循环过程[9,10,11,12,13,14].例如,Wang et al[13]通过双势阱模型对AdK的构象变化自由能面及其动力学机制做了详细研究,并深入刻画了底物分子结合与蛋白质构象运动之间的耦合机制.Hanson et al[5]通过单分子FRET实验跟踪了酶分子在整个催化循环中的构象分布,发现即使在没有结合底物的情况下,AdK仍有很大概率处于构象“关闭”状态.Ye et al[14]基于常规分子模拟和加速采样方法对整个催化循环进行了模拟,提出了催化循环中底物结合和构象运动的可能耦合机制.特别是,Adkar et al[15]基于分子动力学模拟发现,AdK在催化循环中存在“半开半闭”的构象状态,并且这种状态的稳定性来源于水分子和极性氨基酸(精氨酸和组氨酸)之间的特异性相互作用.最近,人们也开始关注和水分子在催化循环中的作用.例如,Kerns et al[4]基于结构生物学方法深入探讨了在催化循环中的作用,发现不仅在磷酸根转移反应中起了关键作用,还有助于通过静电屏蔽效应促进催化产物释放.崔大超等[16]也报道了与催化产物ADP的配位情况.另外,关于催化循环路径的研究也取得了重要进展.例如,以往认为AdK的催化循环过程遵循图1c的流程,即产物完全释放后才有底物结合[4].最近的研究发现,在AdK的催化循环中,底物分子可以在限速产物释放之前结合形成底物⁃产物共存态[17].这种,底物⁃产物共存态会导致结合位点的空间阻挫效应,并能够促进产物释放(图1d). ...
... [13]通过双势阱模型对AdK的构象变化自由能面及其动力学机制做了详细研究,并深入刻画了底物分子结合与蛋白质构象运动之间的耦合机制.Hanson et al[5]通过单分子FRET实验跟踪了酶分子在整个催化循环中的构象分布,发现即使在没有结合底物的情况下,AdK仍有很大概率处于构象“关闭”状态.Ye et al[14]基于常规分子模拟和加速采样方法对整个催化循环进行了模拟,提出了催化循环中底物结合和构象运动的可能耦合机制.特别是,Adkar et al[15]基于分子动力学模拟发现,AdK在催化循环中存在“半开半闭”的构象状态,并且这种状态的稳定性来源于水分子和极性氨基酸(精氨酸和组氨酸)之间的特异性相互作用.最近,人们也开始关注和水分子在催化循环中的作用.例如,Kerns et al[4]基于结构生物学方法深入探讨了在催化循环中的作用,发现不仅在磷酸根转移反应中起了关键作用,还有助于通过静电屏蔽效应促进催化产物释放.崔大超等[16]也报道了与催化产物ADP的配位情况.另外,关于催化循环路径的研究也取得了重要进展.例如,以往认为AdK的催化循环过程遵循图1c的流程,即产物完全释放后才有底物结合[4].最近的研究发现,在AdK的催化循环中,底物分子可以在限速产物释放之前结合形成底物⁃产物共存态[17].这种,底物⁃产物共存态会导致结合位点的空间阻挫效应,并能够促进产物释放(图1d). ...
Electrostatic interactions determine entrance/release order of substrates in the catalytic cycle of adenylate kinase
2
2019
... 在以往的研究中,人们利用实验和分子模拟的方法,从结构和动力学上探讨了AdK的催化循环过程[9,10,11,12,13,14].例如,Wang et al[13]通过双势阱模型对AdK的构象变化自由能面及其动力学机制做了详细研究,并深入刻画了底物分子结合与蛋白质构象运动之间的耦合机制.Hanson et al[5]通过单分子FRET实验跟踪了酶分子在整个催化循环中的构象分布,发现即使在没有结合底物的情况下,AdK仍有很大概率处于构象“关闭”状态.Ye et al[14]基于常规分子模拟和加速采样方法对整个催化循环进行了模拟,提出了催化循环中底物结合和构象运动的可能耦合机制.特别是,Adkar et al[15]基于分子动力学模拟发现,AdK在催化循环中存在“半开半闭”的构象状态,并且这种状态的稳定性来源于水分子和极性氨基酸(精氨酸和组氨酸)之间的特异性相互作用.最近,人们也开始关注和水分子在催化循环中的作用.例如,Kerns et al[4]基于结构生物学方法深入探讨了在催化循环中的作用,发现不仅在磷酸根转移反应中起了关键作用,还有助于通过静电屏蔽效应促进催化产物释放.崔大超等[16]也报道了与催化产物ADP的配位情况.另外,关于催化循环路径的研究也取得了重要进展.例如,以往认为AdK的催化循环过程遵循图1c的流程,即产物完全释放后才有底物结合[4].最近的研究发现,在AdK的催化循环中,底物分子可以在限速产物释放之前结合形成底物⁃产物共存态[17].这种,底物⁃产物共存态会导致结合位点的空间阻挫效应,并能够促进产物释放(图1d). ...
... [14]基于常规分子模拟和加速采样方法对整个催化循环进行了模拟,提出了催化循环中底物结合和构象运动的可能耦合机制.特别是,Adkar et al[15]基于分子动力学模拟发现,AdK在催化循环中存在“半开半闭”的构象状态,并且这种状态的稳定性来源于水分子和极性氨基酸(精氨酸和组氨酸)之间的特异性相互作用.最近,人们也开始关注和水分子在催化循环中的作用.例如,Kerns et al[4]基于结构生物学方法深入探讨了在催化循环中的作用,发现不仅在磷酸根转移反应中起了关键作用,还有助于通过静电屏蔽效应促进催化产物释放.崔大超等[16]也报道了与催化产物ADP的配位情况.另外,关于催化循环路径的研究也取得了重要进展.例如,以往认为AdK的催化循环过程遵循图1c的流程,即产物完全释放后才有底物结合[4].最近的研究发现,在AdK的催化循环中,底物分子可以在限速产物释放之前结合形成底物⁃产物共存态[17].这种,底物⁃产物共存态会导致结合位点的空间阻挫效应,并能够促进产物释放(图1d). ...
Role of water in the enzymatic catalysis:Study of ATP + AMP→2ADP conversion by Adenylate Kinase
2
2011
... 在以往的研究中,人们利用实验和分子模拟的方法,从结构和动力学上探讨了AdK的催化循环过程[9,10,11,12,13,14].例如,Wang et al[13]通过双势阱模型对AdK的构象变化自由能面及其动力学机制做了详细研究,并深入刻画了底物分子结合与蛋白质构象运动之间的耦合机制.Hanson et al[5]通过单分子FRET实验跟踪了酶分子在整个催化循环中的构象分布,发现即使在没有结合底物的情况下,AdK仍有很大概率处于构象“关闭”状态.Ye et al[14]基于常规分子模拟和加速采样方法对整个催化循环进行了模拟,提出了催化循环中底物结合和构象运动的可能耦合机制.特别是,Adkar et al[15]基于分子动力学模拟发现,AdK在催化循环中存在“半开半闭”的构象状态,并且这种状态的稳定性来源于水分子和极性氨基酸(精氨酸和组氨酸)之间的特异性相互作用.最近,人们也开始关注和水分子在催化循环中的作用.例如,Kerns et al[4]基于结构生物学方法深入探讨了在催化循环中的作用,发现不仅在磷酸根转移反应中起了关键作用,还有助于通过静电屏蔽效应促进催化产物释放.崔大超等[16]也报道了与催化产物ADP的配位情况.另外,关于催化循环路径的研究也取得了重要进展.例如,以往认为AdK的催化循环过程遵循图1c的流程,即产物完全释放后才有底物结合[4].最近的研究发现,在AdK的催化循环中,底物分子可以在限速产物释放之前结合形成底物⁃产物共存态[17].这种,底物⁃产物共存态会导致结合位点的空间阻挫效应,并能够促进产物释放(图1d). ...
... 蛋白质内的水分子是蛋白质的重要结构组成部分,对蛋白质的功能和构象变化起到至关重要的作用.例如,Adkar et al[15]的研究发现水分子对AdK的半开半闭构象状态的稳定性起了关键作用.为了理解不同状态下水分子与之间的相互作用,本文模拟了DD,TD态下,AdK分别在构象闭态和构象开态中,水分子与的配位情况.在判断水分子是否与配位结合时,截断距离设置为2.6.所采用的截断距离能够包含典型的⁃O配位距离[33].如图2a所示,在DD态下,AdK在构象闭态和构象开态平均结合的水分子数目分别为2.2和2.8个.相应的代表性结构在图2b中给出.对比TD态与DD态配位水分子数目的变化可以看出,在TD态时,构象闭态和构象开态的只与一个水分子配位;而在DD态时,构象闭态和构象开态的可以分别与两个和三个水分子配位.进一步的分析发现,这种TD态和DD态的水合现象的差异来源于与磷酸根的不同结合模式.在DD态,分别与两个ADP的末端磷酸根结合.而在TD态,倾向于与ATP的两个磷酸根以及ADP的末端磷酸根结合;从而只可以在有限的空间方向上配位一个水分子.这种TD态的与ATP磷酸根的结合模式使得其水分子配位数即使在构象打开后也不会有显著变化,表现出与DD的水分子配位情况的显著差别.这种在TD态和DD态的不同位配位模式可能会进一步影响蛋白质的局部氢键网络结构,进而影响蛋白质的构象变化和产物释放过程. ...
腺苷酸激酶催化循环后期Mg2+转移的分子动力学模拟
1
2016
... 在以往的研究中,人们利用实验和分子模拟的方法,从结构和动力学上探讨了AdK的催化循环过程[9,10,11,12,13,14].例如,Wang et al[13]通过双势阱模型对AdK的构象变化自由能面及其动力学机制做了详细研究,并深入刻画了底物分子结合与蛋白质构象运动之间的耦合机制.Hanson et al[5]通过单分子FRET实验跟踪了酶分子在整个催化循环中的构象分布,发现即使在没有结合底物的情况下,AdK仍有很大概率处于构象“关闭”状态.Ye et al[14]基于常规分子模拟和加速采样方法对整个催化循环进行了模拟,提出了催化循环中底物结合和构象运动的可能耦合机制.特别是,Adkar et al[15]基于分子动力学模拟发现,AdK在催化循环中存在“半开半闭”的构象状态,并且这种状态的稳定性来源于水分子和极性氨基酸(精氨酸和组氨酸)之间的特异性相互作用.最近,人们也开始关注和水分子在催化循环中的作用.例如,Kerns et al[4]基于结构生物学方法深入探讨了在催化循环中的作用,发现不仅在磷酸根转移反应中起了关键作用,还有助于通过静电屏蔽效应促进催化产物释放.崔大超等[16]也报道了与催化产物ADP的配位情况.另外,关于催化循环路径的研究也取得了重要进展.例如,以往认为AdK的催化循环过程遵循图1c的流程,即产物完全释放后才有底物结合[4].最近的研究发现,在AdK的催化循环中,底物分子可以在限速产物释放之前结合形成底物⁃产物共存态[17].这种,底物⁃产物共存态会导致结合位点的空间阻挫效应,并能够促进产物释放(图1d). ...
腺苷酸激酶催化循环后期Mg2+转移的分子动力学模拟
1
2016
... 在以往的研究中,人们利用实验和分子模拟的方法,从结构和动力学上探讨了AdK的催化循环过程[9,10,11,12,13,14].例如,Wang et al[13]通过双势阱模型对AdK的构象变化自由能面及其动力学机制做了详细研究,并深入刻画了底物分子结合与蛋白质构象运动之间的耦合机制.Hanson et al[5]通过单分子FRET实验跟踪了酶分子在整个催化循环中的构象分布,发现即使在没有结合底物的情况下,AdK仍有很大概率处于构象“关闭”状态.Ye et al[14]基于常规分子模拟和加速采样方法对整个催化循环进行了模拟,提出了催化循环中底物结合和构象运动的可能耦合机制.特别是,Adkar et al[15]基于分子动力学模拟发现,AdK在催化循环中存在“半开半闭”的构象状态,并且这种状态的稳定性来源于水分子和极性氨基酸(精氨酸和组氨酸)之间的特异性相互作用.最近,人们也开始关注和水分子在催化循环中的作用.例如,Kerns et al[4]基于结构生物学方法深入探讨了在催化循环中的作用,发现不仅在磷酸根转移反应中起了关键作用,还有助于通过静电屏蔽效应促进催化产物释放.崔大超等[16]也报道了与催化产物ADP的配位情况.另外,关于催化循环路径的研究也取得了重要进展.例如,以往认为AdK的催化循环过程遵循图1c的流程,即产物完全释放后才有底物结合[4].最近的研究发现,在AdK的催化循环中,底物分子可以在限速产物释放之前结合形成底物⁃产物共存态[17].这种,底物⁃产物共存态会导致结合位点的空间阻挫效应,并能够促进产物释放(图1d). ...
Overcoming the bottleneck of the enzymatic cycle by steric frustration
2
2019
... 在以往的研究中,人们利用实验和分子模拟的方法,从结构和动力学上探讨了AdK的催化循环过程[9,10,11,12,13,14].例如,Wang et al[13]通过双势阱模型对AdK的构象变化自由能面及其动力学机制做了详细研究,并深入刻画了底物分子结合与蛋白质构象运动之间的耦合机制.Hanson et al[5]通过单分子FRET实验跟踪了酶分子在整个催化循环中的构象分布,发现即使在没有结合底物的情况下,AdK仍有很大概率处于构象“关闭”状态.Ye et al[14]基于常规分子模拟和加速采样方法对整个催化循环进行了模拟,提出了催化循环中底物结合和构象运动的可能耦合机制.特别是,Adkar et al[15]基于分子动力学模拟发现,AdK在催化循环中存在“半开半闭”的构象状态,并且这种状态的稳定性来源于水分子和极性氨基酸(精氨酸和组氨酸)之间的特异性相互作用.最近,人们也开始关注和水分子在催化循环中的作用.例如,Kerns et al[4]基于结构生物学方法深入探讨了在催化循环中的作用,发现不仅在磷酸根转移反应中起了关键作用,还有助于通过静电屏蔽效应促进催化产物释放.崔大超等[16]也报道了与催化产物ADP的配位情况.另外,关于催化循环路径的研究也取得了重要进展.例如,以往认为AdK的催化循环过程遵循图1c的流程,即产物完全释放后才有底物结合[4].最近的研究发现,在AdK的催化循环中,底物分子可以在限速产物释放之前结合形成底物⁃产物共存态[17].这种,底物⁃产物共存态会导致结合位点的空间阻挫效应,并能够促进产物释放(图1d). ...
The crystal structure of Mycobacterium tuberculosis adenylate kinase in complex with two molecules of ADP and Mg2+ supports an associative mechanism for phosphoryl transfer
2
2006
... 分子动力学模拟使用腺苷酸激酶的构象闭合态作为初始结构(PDB code:1AKE)[18].底物和产物分子的坐标由构象闭态晶体结构(PDB:1AKE)中的配体分子Ap5A构建.由于晶体结构1AKE中没有的位置信息,在分子模拟中,的位置基于Berry and Phillips[20]给出的晶体结构(PDB code:1ZIO)重建.蛋白质AdK放置在一个边长为27的截角正八面体水盒子,共包含约8000个TIP3P水分子[21].分子动力学模拟采用了Amber14软件[22],蛋白质的力场选用了Amberff14SB力场[23],ATP和ADP的力场使用了Meagher et al[24]给出的参数;参数选自Allnér et al[25].另外,在模拟体系中加入了来维持系统的电中性[26]所有的模拟中,非键相互作用的截断距离被设置为9,并使用了PME方法来计算长程静电相互作用[27].所有与氢原子相连的共价键采用SHAKE算法进行约束[28],模拟的时间步长设置为2 fs. ...
... 蛋白质内的水分子是蛋白质的重要结构组成部分,对蛋白质的功能和构象变化起到至关重要的作用.例如,Adkar et al[15]的研究发现水分子对AdK的半开半闭构象状态的稳定性起了关键作用.为了理解不同状态下水分子与之间的相互作用,本文模拟了DD,TD态下,AdK分别在构象闭态和构象开态中,水分子与的配位情况.在判断水分子是否与配位结合时,截断距离设置为2.6.所采用的截断距离能够包含典型的⁃O配位距离[33].如图2a所示,在DD态下,AdK在构象闭态和构象开态平均结合的水分子数目分别为2.2和2.8个.相应的代表性结构在图2b中给出.对比TD态与DD态配位水分子数目的变化可以看出,在TD态时,构象闭态和构象开态的只与一个水分子配位;而在DD态时,构象闭态和构象开态的可以分别与两个和三个水分子配位.进一步的分析发现,这种TD态和DD态的水合现象的差异来源于与磷酸根的不同结合模式.在DD态,分别与两个ADP的末端磷酸根结合.而在TD态,倾向于与ATP的两个磷酸根以及ADP的末端磷酸根结合;从而只可以在有限的空间方向上配位一个水分子.这种TD态的与ATP磷酸根的结合模式使得其水分子配位数即使在构象打开后也不会有显著变化,表现出与DD的水分子配位情况的显著差别.这种在TD态和DD态的不同位配位模式可能会进一步影响蛋白质的局部氢键网络结构,进而影响蛋白质的构象变化和产物释放过程.
Fig.1 (a) Crystal structure of the AdK at the closed state (PDB code: 1AKE), (b) crystal structure of the AdK at the open state (PDB code: 4AKE), (c, d) two possible pathways of the enzymatic cycle In the pathway (c), the new substrates bind to the enzyme after the fully release of the products, whereas in the pathway (d), the new substrate ATP binds to the enzyme before the release of the product ADP in the NMP domain, forming the substrate⁃product cobound state (ATP⁃ADP).LID domain is colored in red,NMP domain is colored in blue and core domain is colored in green.Fig.1
(a) Average number of<span class="formulaText"><inline-formula><math id="M48"><msub><mrow><mi mathvariant="normal">H</mi></mrow><mrow><mn mathvariant="normal">2</mn></mrow></msub><mi mathvariant="normal">O</mi></math></span></inline-formula></span> coordinating with Mg<sup>2+</sup> in DD and TD states at the closed and open states (error bar indicates the standard error of the number of<span class="formulaText"><inline-formula><math id="M49"><msub><mrow><mi mathvariant="normal">H</mi></mrow><mrow><mn mathvariant="normal">2</mn></mrow></msub><mi mathvariant="normal">O</mi></math></span></inline-formula></span> in the corresponding state), (b) representative structures showing the coordination between Mg<sup>2+</sup> and<span class="formulaText"><inline-formula><math id="M50"><msub><mrow><mi mathvariant="normal">H</mi></mrow><mrow><mn mathvariant="normal">2</mn></mrow></msub><mi mathvariant="normal">O</mi></math></span></inline-formula></span> in DD and TD states at the closed and open state (b) Mg<sup>2+</sup>配位结构示意图,左上、右上、左下、右下依次为DD态的构象闭态、DD态的构象开态、TD态的构象闭态以及TD态的构象开态,Mg<sup>2+</sup>由绛红色小球表示Fig.22.2 底物⁃产物共存态的<span class="formulaText"><inline-formula><math id="M51"><mi mathvariant="bold">M</mi><msup><mrow><mi mathvariant="bold">g</mi></mrow><mrow><mn mathvariant="normal">2</mn><mo>+</mo></mrow></msup></math></span></inline-formula></span>在产物释放过程的配位交换
Adenylate kinase motions during catalysis:an energetic counterweight balancing substrate binding
1
1996
... 蛋白质内的水分子是蛋白质的重要结构组成部分,对蛋白质的功能和构象变化起到至关重要的作用.例如,Adkar et al[15]的研究发现水分子对AdK的半开半闭构象状态的稳定性起了关键作用.为了理解不同状态下水分子与之间的相互作用,本文模拟了DD,TD态下,AdK分别在构象闭态和构象开态中,水分子与的配位情况.在判断水分子是否与配位结合时,截断距离设置为2.6.所采用的截断距离能够包含典型的⁃O配位距离[33].如图2a所示,在DD态下,AdK在构象闭态和构象开态平均结合的水分子数目分别为2.2和2.8个.相应的代表性结构在图2b中给出.对比TD态与DD态配位水分子数目的变化可以看出,在TD态时,构象闭态和构象开态的只与一个水分子配位;而在DD态时,构象闭态和构象开态的可以分别与两个和三个水分子配位.进一步的分析发现,这种TD态和DD态的水合现象的差异来源于与磷酸根的不同结合模式.在DD态,分别与两个ADP的末端磷酸根结合.而在TD态,倾向于与ATP的两个磷酸根以及ADP的末端磷酸根结合;从而只可以在有限的空间方向上配位一个水分子.这种TD态的与ATP磷酸根的结合模式使得其水分子配位数即使在构象打开后也不会有显著变化,表现出与DD的水分子配位情况的显著差别.这种在TD态和DD态的不同位配位模式可能会进一步影响蛋白质的局部氢键网络结构,进而影响蛋白质的构象变化和产物释放过程.
Fig.1 (a) Crystal structure of the AdK at the closed state (PDB code: 1AKE), (b) crystal structure of the AdK at the open state (PDB code: 4AKE), (c, d) two possible pathways of the enzymatic cycle In the pathway (c), the new substrates bind to the enzyme after the fully release of the products, whereas in the pathway (d), the new substrate ATP binds to the enzyme before the release of the product ADP in the NMP domain, forming the substrate⁃product cobound state (ATP⁃ADP).LID domain is colored in red,NMP domain is colored in blue and core domain is colored in green.Fig.1
(a) Average number of<span class="formulaText"><inline-formula><math id="M48"><msub><mrow><mi mathvariant="normal">H</mi></mrow><mrow><mn mathvariant="normal">2</mn></mrow></msub><mi mathvariant="normal">O</mi></math></span></inline-formula></span> coordinating with Mg<sup>2+</sup> in DD and TD states at the closed and open states (error bar indicates the standard error of the number of<span class="formulaText"><inline-formula><math id="M49"><msub><mrow><mi mathvariant="normal">H</mi></mrow><mrow><mn mathvariant="normal">2</mn></mrow></msub><mi mathvariant="normal">O</mi></math></span></inline-formula></span> in the corresponding state), (b) representative structures showing the coordination between Mg<sup>2+</sup> and<span class="formulaText"><inline-formula><math id="M50"><msub><mrow><mi mathvariant="normal">H</mi></mrow><mrow><mn mathvariant="normal">2</mn></mrow></msub><mi mathvariant="normal">O</mi></math></span></inline-formula></span> in DD and TD states at the closed and open state (b) Mg<sup>2+</sup>配位结构示意图,左上、右上、左下、右下依次为DD态的构象闭态、DD态的构象开态、TD态的构象闭态以及TD态的构象开态,Mg<sup>2+</sup>由绛红色小球表示Fig.22.2 底物⁃产物共存态的<span class="formulaText"><inline-formula><math id="M51"><mi mathvariant="bold">M</mi><msup><mrow><mi mathvariant="bold">g</mi></mrow><mrow><mn mathvariant="normal">2</mn><mo>+</mo></mrow></msup></math></span></inline-formula></span>在产物释放过程的配位交换
Crystal structures ofBacillus stearothermophilus adenylate kinase with bound Ap5A,Mg2+ Ap5A,and Mn2+ Ap5A reveal an intermediate lid position and six coordinate octahedral geometry for bound Mg2+ and Mn2+
1
1998
... 分子动力学模拟使用腺苷酸激酶的构象闭合态作为初始结构(PDB code:1AKE)[18].底物和产物分子的坐标由构象闭态晶体结构(PDB:1AKE)中的配体分子Ap5A构建.由于晶体结构1AKE中没有的位置信息,在分子模拟中,的位置基于Berry and Phillips[20]给出的晶体结构(PDB code:1ZIO)重建.蛋白质AdK放置在一个边长为27的截角正八面体水盒子,共包含约8000个TIP3P水分子[21].分子动力学模拟采用了Amber14软件[22],蛋白质的力场选用了Amberff14SB力场[23],ATP和ADP的力场使用了Meagher et al[24]给出的参数;参数选自Allnér et al[25].另外,在模拟体系中加入了来维持系统的电中性[26]所有的模拟中,非键相互作用的截断距离被设置为9,并使用了PME方法来计算长程静电相互作用[27].所有与氢原子相连的共价键采用SHAKE算法进行约束[28],模拟的时间步长设置为2 fs. ...
Comparison of simple potential functions for simulating liquid water
1
1983
... 分子动力学模拟使用腺苷酸激酶的构象闭合态作为初始结构(PDB code:1AKE)[18].底物和产物分子的坐标由构象闭态晶体结构(PDB:1AKE)中的配体分子Ap5A构建.由于晶体结构1AKE中没有的位置信息,在分子模拟中,的位置基于Berry and Phillips[20]给出的晶体结构(PDB code:1ZIO)重建.蛋白质AdK放置在一个边长为27的截角正八面体水盒子,共包含约8000个TIP3P水分子[21].分子动力学模拟采用了Amber14软件[22],蛋白质的力场选用了Amberff14SB力场[23],ATP和ADP的力场使用了Meagher et al[24]给出的参数;参数选自Allnér et al[25].另外,在模拟体系中加入了来维持系统的电中性[26]所有的模拟中,非键相互作用的截断距离被设置为9,并使用了PME方法来计算长程静电相互作用[27].所有与氢原子相连的共价键采用SHAKE算法进行约束[28],模拟的时间步长设置为2 fs. ...
Amber 14
1
2014
... 分子动力学模拟使用腺苷酸激酶的构象闭合态作为初始结构(PDB code:1AKE)[18].底物和产物分子的坐标由构象闭态晶体结构(PDB:1AKE)中的配体分子Ap5A构建.由于晶体结构1AKE中没有的位置信息,在分子模拟中,的位置基于Berry and Phillips[20]给出的晶体结构(PDB code:1ZIO)重建.蛋白质AdK放置在一个边长为27的截角正八面体水盒子,共包含约8000个TIP3P水分子[21].分子动力学模拟采用了Amber14软件[22],蛋白质的力场选用了Amberff14SB力场[23],ATP和ADP的力场使用了Meagher et al[24]给出的参数;参数选自Allnér et al[25].另外,在模拟体系中加入了来维持系统的电中性[26]所有的模拟中,非键相互作用的截断距离被设置为9,并使用了PME方法来计算长程静电相互作用[27].所有与氢原子相连的共价键采用SHAKE算法进行约束[28],模拟的时间步长设置为2 fs. ...
Comparison of multiple Amber force fields and development of improved protein backbone parameters
1
2006
... 分子动力学模拟使用腺苷酸激酶的构象闭合态作为初始结构(PDB code:1AKE)[18].底物和产物分子的坐标由构象闭态晶体结构(PDB:1AKE)中的配体分子Ap5A构建.由于晶体结构1AKE中没有的位置信息,在分子模拟中,的位置基于Berry and Phillips[20]给出的晶体结构(PDB code:1ZIO)重建.蛋白质AdK放置在一个边长为27的截角正八面体水盒子,共包含约8000个TIP3P水分子[21].分子动力学模拟采用了Amber14软件[22],蛋白质的力场选用了Amberff14SB力场[23],ATP和ADP的力场使用了Meagher et al[24]给出的参数;参数选自Allnér et al[25].另外,在模拟体系中加入了来维持系统的电中性[26]所有的模拟中,非键相互作用的截断距离被设置为9,并使用了PME方法来计算长程静电相互作用[27].所有与氢原子相连的共价键采用SHAKE算法进行约束[28],模拟的时间步长设置为2 fs. ...
Development of polyphosphate parameters for use with the AMBER force field
1
2003
... 分子动力学模拟使用腺苷酸激酶的构象闭合态作为初始结构(PDB code:1AKE)[18].底物和产物分子的坐标由构象闭态晶体结构(PDB:1AKE)中的配体分子Ap5A构建.由于晶体结构1AKE中没有的位置信息,在分子模拟中,的位置基于Berry and Phillips[20]给出的晶体结构(PDB code:1ZIO)重建.蛋白质AdK放置在一个边长为27的截角正八面体水盒子,共包含约8000个TIP3P水分子[21].分子动力学模拟采用了Amber14软件[22],蛋白质的力场选用了Amberff14SB力场[23],ATP和ADP的力场使用了Meagher et al[24]给出的参数;参数选自Allnér et al[25].另外,在模拟体系中加入了来维持系统的电中性[26]所有的模拟中,非键相互作用的截断距离被设置为9,并使用了PME方法来计算长程静电相互作用[27].所有与氢原子相连的共价键采用SHAKE算法进行约束[28],模拟的时间步长设置为2 fs. ...
Magnesium ion–water coordination and exchange in biomolecular simulations
1
2012
... 分子动力学模拟使用腺苷酸激酶的构象闭合态作为初始结构(PDB code:1AKE)[18].底物和产物分子的坐标由构象闭态晶体结构(PDB:1AKE)中的配体分子Ap5A构建.由于晶体结构1AKE中没有的位置信息,在分子模拟中,的位置基于Berry and Phillips[20]给出的晶体结构(PDB code:1ZIO)重建.蛋白质AdK放置在一个边长为27的截角正八面体水盒子,共包含约8000个TIP3P水分子[21].分子动力学模拟采用了Amber14软件[22],蛋白质的力场选用了Amberff14SB力场[23],ATP和ADP的力场使用了Meagher et al[24]给出的参数;参数选自Allnér et al[25].另外,在模拟体系中加入了来维持系统的电中性[26]所有的模拟中,非键相互作用的截断距离被设置为9,并使用了PME方法来计算长程静电相互作用[27].所有与氢原子相连的共价键采用SHAKE算法进行约束[28],模拟的时间步长设置为2 fs. ...
Determination of alkali and halide monovalent ion parameters for use in explicitly solvated biomolecular simulations
1
2008
... 分子动力学模拟使用腺苷酸激酶的构象闭合态作为初始结构(PDB code:1AKE)[18].底物和产物分子的坐标由构象闭态晶体结构(PDB:1AKE)中的配体分子Ap5A构建.由于晶体结构1AKE中没有的位置信息,在分子模拟中,的位置基于Berry and Phillips[20]给出的晶体结构(PDB code:1ZIO)重建.蛋白质AdK放置在一个边长为27的截角正八面体水盒子,共包含约8000个TIP3P水分子[21].分子动力学模拟采用了Amber14软件[22],蛋白质的力场选用了Amberff14SB力场[23],ATP和ADP的力场使用了Meagher et al[24]给出的参数;参数选自Allnér et al[25].另外,在模拟体系中加入了来维持系统的电中性[26]所有的模拟中,非键相互作用的截断距离被设置为9,并使用了PME方法来计算长程静电相互作用[27].所有与氢原子相连的共价键采用SHAKE算法进行约束[28],模拟的时间步长设置为2 fs. ...
Particle mesh Ewald:AnN·log(N) method for Ewald sums in large systems
1
1993
... 分子动力学模拟使用腺苷酸激酶的构象闭合态作为初始结构(PDB code:1AKE)[18].底物和产物分子的坐标由构象闭态晶体结构(PDB:1AKE)中的配体分子Ap5A构建.由于晶体结构1AKE中没有的位置信息,在分子模拟中,的位置基于Berry and Phillips[20]给出的晶体结构(PDB code:1ZIO)重建.蛋白质AdK放置在一个边长为27的截角正八面体水盒子,共包含约8000个TIP3P水分子[21].分子动力学模拟采用了Amber14软件[22],蛋白质的力场选用了Amberff14SB力场[23],ATP和ADP的力场使用了Meagher et al[24]给出的参数;参数选自Allnér et al[25].另外,在模拟体系中加入了来维持系统的电中性[26]所有的模拟中,非键相互作用的截断距离被设置为9,并使用了PME方法来计算长程静电相互作用[27].所有与氢原子相连的共价键采用SHAKE算法进行约束[28],模拟的时间步长设置为2 fs. ...
Rattle:A “velocity” version of the shake algorithm for molecular dynamics calculations
1
1983
... 分子动力学模拟使用腺苷酸激酶的构象闭合态作为初始结构(PDB code:1AKE)[18].底物和产物分子的坐标由构象闭态晶体结构(PDB:1AKE)中的配体分子Ap5A构建.由于晶体结构1AKE中没有的位置信息,在分子模拟中,的位置基于Berry and Phillips[20]给出的晶体结构(PDB code:1ZIO)重建.蛋白质AdK放置在一个边长为27的截角正八面体水盒子,共包含约8000个TIP3P水分子[21].分子动力学模拟采用了Amber14软件[22],蛋白质的力场选用了Amberff14SB力场[23],ATP和ADP的力场使用了Meagher et al[24]给出的参数;参数选自Allnér et al[25].另外,在模拟体系中加入了来维持系统的电中性[26]所有的模拟中,非键相互作用的截断距离被设置为9,并使用了PME方法来计算长程静电相互作用[27].所有与氢原子相连的共价键采用SHAKE算法进行约束[28],模拟的时间步长设置为2 fs. ...
A rapidly convergent descent method for minimization
Ligation of water to magnesium chelates of biological importance
2
2013
... 蛋白质内的水分子是蛋白质的重要结构组成部分,对蛋白质的功能和构象变化起到至关重要的作用.例如,Adkar et al[15]的研究发现水分子对AdK的半开半闭构象状态的稳定性起了关键作用.为了理解不同状态下水分子与之间的相互作用,本文模拟了DD,TD态下,AdK分别在构象闭态和构象开态中,水分子与的配位情况.在判断水分子是否与配位结合时,截断距离设置为2.6.所采用的截断距离能够包含典型的⁃O配位距离[33].如图2a所示,在DD态下,AdK在构象闭态和构象开态平均结合的水分子数目分别为2.2和2.8个.相应的代表性结构在图2b中给出.对比TD态与DD态配位水分子数目的变化可以看出,在TD态时,构象闭态和构象开态的只与一个水分子配位;而在DD态时,构象闭态和构象开态的可以分别与两个和三个水分子配位.进一步的分析发现,这种TD态和DD态的水合现象的差异来源于与磷酸根的不同结合模式.在DD态,分别与两个ADP的末端磷酸根结合.而在TD态,倾向于与ATP的两个磷酸根以及ADP的末端磷酸根结合;从而只可以在有限的空间方向上配位一个水分子.这种TD态的与ATP磷酸根的结合模式使得其水分子配位数即使在构象打开后也不会有显著变化,表现出与DD的水分子配位情况的显著差别.这种在TD态和DD态的不同位配位模式可能会进一步影响蛋白质的局部氢键网络结构,进而影响蛋白质的构象变化和产物释放过程. ...